


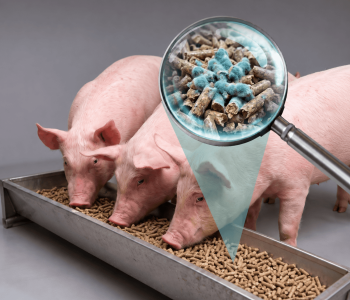
El problema del “secuestrante universal”
En la práctica, el término secuestrante suele utilizarse como si describiera una solución capaz de actuar frente a cualquier micotoxina. Sin embargo, estas moléculas difieren en tamaño, polaridad, carga y estructura; por ello, un material que retiene eficazmente aflatoxinas puede mostrar una afinidad limitada por deoxynivalenol (DON), zearalenona (ZEN) o fumonisinas.

Esta heterogeneidad explica por qué productos aparentemente similares generan resultados distintos entre estudios. Los adsorbentes minerales cuentan con el respaldo más consistente frente a las aflatoxinas.
Para las fumonisinas, la evidencia más consistente de reducción de la exposición corresponde a esterasas específicas capaces de transformar FB1 en metabolitos considerablemente menos tóxicos.
| Por tanto, la pregunta correcta no es qué secuestrante funciona para todas las micotoxinas, sino qué mecanismo resulta compatible con las toxinas presentes y qué evidencia permite confirmar su acción. |
Esta distinción constituye el punto de partida para seleccionar una estrategia antimicotoxinas técnicamente justificable.
Adsorber, transformar o proteger: no son sinónimos
Aunque se agrupen comercialmente como secuestrantes, los aditivos antimicotoxinas actúan mediante mecanismos distintos. Reconocerlos permite definir qué resultados exigir.
La adsorción retiene la micotoxina en el tracto gastrointestinal y reduce su absorción. Incluye minerales como bentonitas, aluminosilicatos y clinoptilolita, y materiales orgánicos como paredes celulares de levadura, β-glucanos, glucomananos, materiales carbonosos y algunos subproductos vegetales.
| Su eficacia depende de la superficie, porosidad, carga, estabilidad de la unión y compatibilidad con cada toxina. Por ello, el resultado de una arcilla, levadura o carbón no puede extrapolarse a toda su categoría (Holanda & Kim, 2021; Kim et al., 2019). |

Las mezclas multicomponente pueden ampliar la cobertura, pero reunir arcillas, levaduras, enzimas y fitogénicos no demuestra la contribución de cada componente.
La evidencia cambia con la micotoxina
La eficacia de una estrategia depende de la micotoxina y del mecanismo evaluado. Una formulación puede reducir la exposición a una toxina, mitigar parcialmente otra y carecer de actividad frente a una tercera.
| Por ello, un adsorbente debe demostrar menor absorción; una enzima, la formación de productos menos tóxicos y la reducción del efecto biológico. La evidencia debe analizarse por micotoxina, no solo por tipo de producto. |
Aflatoxinas: la evidencia más consistente para la adsorción
Las aflatoxinas, especialmente AFB1, constituyen el escenario más favorable para la adsorción mineral. Su estructura facilita la unión a determinadas bentonitas, aluminosilicatos o clinoptilolitas; si la interacción permanece estable durante la digestión, disminuye la fracción disponible para absorción y metabolismo hepático.
Aoyanagi et al. (2023) expusieron durante 42 días a 24 cerdos a una mezcla de aproximadamente 0,5 mg/kg de aflatoxinas, 1,0 mg/kg de fumonisinas y 1,0 mg/kg de ZEN.
Los dos productos multicomponentes evaluados atenuaron algunos cambios histológicos y redujeron residuos hepáticos y renales. Sin embargo, los seis tratamientos incluyeron solo cuatro animales cada uno y emplearon concentraciones elevadas; por tanto, los resultados respaldan únicamente esas formulaciones y condiciones, no toda una categoría de adsorbentes.

Fumonisinas: el ejemplo más completo de biotransformación
Las fumonisinas presentan una adsorción convencional poco predecible. La fumonisina B1 (FB1) inhibe la ceramida sintasa y aumenta la esfinganina respecto de la esfingosina; por ello, las relaciones Sa/So y Sa1P/So1P son biomarcadores especialmente útiles.
La especificidad también es decisiva. Wang et al. (2024) compararon dos carboxilesterasas en cerdos: FumD redujo un 48,8% la relación sérica Sa/So, mientras que la segunda enzima logró una reducción no significativa del 8,2%.
| Pertenecer a la misma categoría enzimática no garantiza una eficacia equivalente. |
La demostración más completa integra disminución de FB1, formación de HFB1 y normalización de un biomarcador específico. Sus resultados, sin embargo, solo son aplicables a la enzima, actividad y dosis evaluadas.
Zearalenona: no basta con eliminar la molécula original
En ZEN, la desaparición de la molécula original no basta: los productos formados deben presentar menor actividad estrogénica. Esto es especialmente importante en las cerdas prepúberes, sensibles también a metabolitos como α-zearalenol (α-ZEL).
Dänicke et al. (2023) evaluaron 80 lechonas durante 35 días con 2,57 mg/ kg de DON y 0,24 mg/kg de ZEN. El tratamiento suplementado combinó ZenA con metabisulfito de sodio.
La formación de HZEN y DHZEN confirmó la actividad de la enzima y se acompañó de menores concentraciones de metabolitos estrogénicos y pesos relativos de útero y ovarios.
| En un ensayo con exposición combinada a ZEN y ocratoxina A, una formulación multicomponente administrada a 3 g/kg redujo algunos residuos tisulares de ZEN, α-ZEL y ocratoxina A y mejoró la conversión alimenticia. |
Sin embargo, el estudio no evaluó directamente indicadores reproductivos, por lo que no permite concluir sobre la prevención del edema vulvar o de los cambios del tracto reproductivo (Tassis et al., 2024).
| La eficacia debe confirmarse midiendo ZEN y sus metabolitos junto con indicadores reproductivos específicos. |
DON: el principal reto para las estrategias antimicotoxinas
En otro ensayo, 48 lechones consumieron durante 21 días una dieta con 2,3 mg/kg de DON. Un carbón vegetal poroso redujo la concentración sérica conjunta de DON y DOM-1 y atenuó alteraciones intestinales, inflamatorias, oxidativas y de la microbiota.
La transformación química también depende del proceso. En 80 lechonas, la inclusión de 2,5 g/kg de metabisulfito de sodio en el alimento seco redujo alrededor del 20 % del DON del alimento, con disminuciones semejantes en plasma y orina, magnitud considerada insuficiente.
| La desepoxidación a DOM-1 y la epimerización a 3-epi-DON generan metabolitos menos tóxicos. En 24 lechones, ninguno produjo las lesiones intestinales, hepáticas y linfoides observadas con DON. |
Estas alternativas amplían el control, pero no constituyen una solución universal: la eficacia depende del material, la cepa, la formulación, el procesamiento y la demostración de una menor exposición sistémica.
Mic0toxinas con evidencia todavía insuficiente
La evidencia directa en cerdos es más escasa para ocratoxina A, T-2/HT-2 y las formas modificadas o enmascaradas. Gran parte procede de estudios in vitro, otras especies o formulaciones que impiden atribuir el efecto a un mecanismo.
Adsorbentes orgánicos: más allá de las arcillas
En ensayos con 120 cerdos en crecimiento y 48 lechones, un extracto de pared celular de levadura al 0,2 % mejoró algunos indicadores productivos, oxidativos e intestinales durante la exposición combinada a aflatoxinas, fumonisinas y DON, especialmente en los animales jóvenes.
En un ensayo agudo con 28 lechones, el orujo blanco de uva redujo un 67 % el biomarcador urinario de AFB1 y un 69 % el de ZEN; las reducciones de FB1, DON y ocratoxina A no fueron significativas.
En conjunto, la evidencia respalda relaciones específicas: adsorción para aflatoxinas, hidrólisis enzimática para fumonisinas, reducción de la estrogenicidad para ZEN y estrategias dependientes del material o microorganismo para DON. La selección debe relacionar toxina, mecanismo y biomarcador, no contabilizar las toxinas declaradas en la etiqueta.

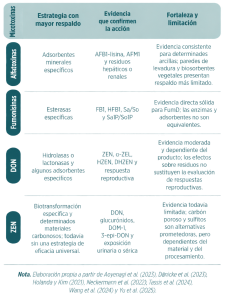
Tabla 1. Evidencia por micotoxina y mecanismo.
Biomarcadores: demostrar que el mecanismo funciona
En fumonisinas, la disminución de FB1 sistémica y la aparición de HFB1 fecal evidencian hidrólisis. Las relaciones Sa/So y Sa1P/So1P permiten valorar la alteración del metabolismo de los esfingolípidos; la segunda puede ser más sensible ante exposiciones bajas. Ambas son biomarcadores de efecto y no sustituyen la cuantificación de FB1 y HFB1 (Lassallette et al., 2025; Neckermann et al., 2022).
Para ZEN deben medirse la toxina, metabolitos estrogénicos como α-ZEL y productos de hidrólisis como HZEN y DHZEN, junto con respuestas reproductivas.
En DON, la concentración urinaria de la toxina y sus glucurónidos estima la exposición, mientras que DOM-1 evidencia desepoxidación, considerando el momento del muestreo y la vía de excreción (Panisson et al., 2023).
Para AFB1 pueden utilizarse el aducto AFB1-lisina, AFM1 y residuos tisulares.
| El estrés oxidativo, las citocinas y la integridad intestinal son indicadores de bioprotección. Su mejoría sin una reducción de la exposición interna puede demostrar protección del animal, pero no detoxificación directa. |
De la analítica del alimento a la decisión práctica
La selección de una estrategia antimicotoxinas debe comenzar en el alimento, no en el catálogo comercial. El primer paso es obtener una muestra representativa, porque la contaminación se distribuye de manera heterogénea entre silos, lotes e ingredientes.
Siempre que sea posible, el análisis debe incluir varias micotoxinas y sus formas modificadas, ya que la co-contaminación es más frecuente que la exposición aislada.
Una vez identificado el perfil de riesgo, debe elegirse un mecanismo compatible con las toxinas predominantes. La presencia de varias micotoxinas puede justificar una formulación multimodal, pero no demuestra que todos sus componentes contribuyan con la misma eficacia.
Antes de incorporar un producto conviene plantear cuatro preguntas:
- ¿Fue evaluado en cerdos?
- ¿La concentración de micotoxinas y la dosis del aditivo son comparables con la situación de campo?
- ¿Se utilizaron biomarcadores coherentes con el mecanismo?
- ¿Los resultados fueron reproducidos?
| La respuesta debe vigilarse mediante consumo, ganancia de peso, conversión alimenticia y signos clínicos, complementados, cuando el riesgo lo justifique, con biomarcadores de exposición o efecto. |
Una mejora productiva sin que disminuya la exposición interna puede respaldar bioprotección, pero no demuestra adsorción o transformación. La decisión técnicamente sólida integra analítica, mecanismo, evidencia en cerdos y seguimiento.
Límites, seguridad y calidad de la evidencia
No todas las pruebas sostienen la misma conclusión. La afinidad o degradación observada in vitro demuestra que un mecanismo es posible, pero no que funcionará en el cerdo.
Un ensayo in vivo ofrece mayor certeza cuando cuantifica la toxina, sus metabolitos y un efecto biológico compatible. La evidencia es más sólida si la respuesta se reproduce con la formulación final, a la dosis comercial y por grupos independientes.
| Muchos estudios utilizan pocos animales, periodos cortos y concentraciones elevadas para producir respuestas detectables. Estos diseños demuestran mecanismos, pero representan de manera incompleta la exposición crónica, fluctuante y con múltiples micotoxinas de las granjas. |
También son escasos los estudios prolongados en reproductoras, las evaluaciones económicas y los ensayos comerciales.
La seguridad debe valorarse junto con la eficacia. Los adsorbentes necesitan una unión suficientemente selectiva para no interferir con nutrientes o medicamentos. Enzimas y microorganismos deben conservar su actividad durante el almacenamiento, el procesamiento y el tránsito gastrointestinal.
| El alcance de la recomendación debe coincidir con el de la evidencia. Demostrar actividad frente a una micotoxina no justifica presentar el producto como protección universal; deben especificarse la toxina, el mecanismo, la dosis y los biomarcadores que respaldan la respuesta. |
Las estrategias emergentes exigen el mismo criterio. En 96 lechonas expuestas a AFB1 y DON, la suplementación con humato o β-mananasa atenuó algunas alteraciones hematológicas y lesiones hepáticas.
No obstante, la capacidad de unión in vitro fue inferior a la de los adsorbentes minerales y no se cuantificaron micotoxinas o metabolitos en el animal.
El estudio demuestra protección parcial, pero no detoxificación sistémica (Garavito-Duarte et al., 2025). Probióticos, posbióticos, alimentos fermentados, fitogénicos y adsorbentes nanoestructurados también pueden proteger la barrera intestinal o mejorar la tolerancia, aunque todavía faltan ensayos porcinos con biomarcadores de exposición, replicación independiente y evaluación de seguridad a largo plazo.
Finalmente, ningún aditivo reemplaza la prevención. El control de proveedores, el muestreo representativo, el secado, el almacenamiento y la vigilancia periódica siguen siendo la primera barrera; los aditivos son una herramienta complementaria dentro del programa de gestión.
Conclusión: del secuestrante universal a una estrategia dirigida
La evidencia descarta la idea de un secuestrante universal: la adsorción es más consistente frente a aflatoxinas; para fumonisinas destaca la hidrólisis enzimática; en ZEN debe confirmarse una menor estrogenicidad; y DON mantiene la respuesta más variable.
| La eficacia es específica para la relación entre toxina y mecanismo. |
La selección debe comenzar con un muestreo representativo y la identificación del riesgo. Después corresponde elegir un mecanismo compatible y exigir evidencia en cerdos mediante biomarcadores de exposición y efecto.
Las formulaciones multimodales pueden ser útiles ante la co-contaminación, pero cada componente debe demostrar su contribución.
La mejor estrategia no es la que declara actuar contra más micotoxinas, sino la que conecta diagnóstico, mecanismo, biomarcador y respuesta animal. Este enfoque favorece un uso más preciso, seguro y productivo de los aditivos, sin desplazar la prevención como primera barrera.
Referencias
Aoyanagi, M. M. de C. C., Budiño, F. E. L., Raj, J., Vasiljević, M., Ali, S., Ramalho, L. N. Z., Ramalho, F. S., Corassin, C. H., Ghantous, G. F., & Oliveira, C. A. F. de. (2023). Efficacy of two commercially available adsorbents to reduce the combined toxic effects of dietary aflatoxins, fumonisins, and zearalenone and their residues in the tissues of weaned pigs. Toxins, 15(11), 629. https://doi.org/10.3390/toxins15110629
Bracarense, A. P. F. L., Pierron, A., Pinton, P., Gerez, J. R., Schatzmayr, G., Moll, W.-D., Zhou, T., & Oswald, I. P. (2020). Reduced toxicity of 3-epi-deoxynivalenol and de-epoxy-deoxynivalenol through deoxynivalenol bacterial biotransformation: In vivo analysis in piglets. Food and Chemical Toxicology, 140, 111241. https://doi.org/10.1016/j. fct.2020.111241
Dänicke, S., Carlson, L., Heymann, A.-K., Grümpel-Schlüter, A., Doupovec, B., Schatzmayr, D., Streit, B., Kersten, S., & Kluess, J. (2023). Inactivation of zearalenone (ZEN) and deoxynivalenol (DON) in complete feed for weaned piglets: Efficacy of ZEN hydrolase ZenA and of sodium metabisulfite (SBS) as feed additives. Mycotoxin Research, 39(3), 201–218. https://doi.org/10.1007/s12550-023-00486-2
Devreese, M., Antonissen, G., De Backer, P., & Croubels, S. (2014). Efficacy of active carbon towards the absorption of deoxynivalenol in pigs. Toxins, 6(10), 2998–3004. https://doi.org/10.3390/toxins6102998
Gambacorta, L., Pinton, P., Avantaggiato, G., Oswald, I. P., & Solfrizzo, M. (2016). Grape pomace, an agricultural byproduct reducing mycotoxin absorption: In vivo assessment in pig using urinary biomarkers. Journal of Agricultural and Food Chemistry, 64(35), 6762–6771. https:// doi.org/10.1021/acs.jafc.6b02146
Garavito-Duarte, Y. R., Son, J., Weaver, A. C., & Kim, S. W. (2025). Functional efficacies of humate and β-mannanase against aflatoxin B1 and deoxynivalenol in the diets for nursery pigs. Toxins, 17(9), 456. https://doi. org/10.3390/toxins17090456
Gruber-Dorninger, C., Killinger, M., HöbartnerGußl, A., Rosen, R., Doupovec, B., Aleschko, M., SchwartzZimmermann, H., Greitbauer, O., Marković, Z., Stanković, M., Schöndorfer, K., Vukmirovic, D., Wein, S., & Schatzmayr, D. (2023). Enzymatic degradation of zearalenone in the gastrointestinal tract of pigs, chickens, and rainbow trout. Toxins, 15(1), 48. https://doi.org/10.3390/toxins15010048
Holanda, D. M., & Kim, S. W. (2021). Mycotoxin occurrence, toxicity, and detoxifying agents in pig production with an emphasis on deoxynivalenol. Toxins, 13(2), 171. https:// doi.org/10.3390/toxins13020171
Kim, S. W., Holanda, D. M., Gao, X., Park, I., & Yiannikouris, A. (2019). Efficacy of a yeast cell wall extract to mitigate the effect of naturally co-occurring mycotoxins contaminating feed ingredients fed to young pigs: Impact on gut health, microbiome, and growth. Toxins, 11(11), 633. https:// doi.org/10.3390/toxins11110633
Lassallette, E., Pierron, A., Tardieu, D., Reymondaud, S., Gallissot, M., Rodriguez, M. A., Collén, P. N., Roy, O., & Guerre, P. (2025). Biomarkers of fumonisin exposure in pigs fed the maximum recommended level in Europe. Toxins, 17(2), 69. https://doi.org/10.3390/toxins17020069
Lauwers, M., Croubels, S., Letor, B., Gougoulias, C., & Devreese, M. (2019). Biomarkers for exposure as a tool for efficacy testing of a mycotoxin detoxifier in broiler chickens and pigs. Toxins, 11(4), 187. https://doi.org/10.3390/toxins11040187
Li, F., Wang, J., Huang, L., Chen, H., & Wang, C. (2017). Effects of adding Clostridium sp. WJ06 on intestinal morphology and microbial diversity of growing pigs fed with natural deoxynivalenol-contaminated wheat. Toxins, 9(12), 383. https://doi.org/10.3390/toxins9120383
Liu, M., Zhang, X., Luan, H., Zhang, Y., Xu, W., Feng, W., & Song, P. (2024). Bioenzymatic detoxification of mycotoxins. Frontiers in Microbiology, 15, 1434987. https://doi.org/10.3389/ fmicb.2024.1434987
Neckermann, K., Antonissen, G., Doupovec, B., Schatzmayr, D., Gathumbi, J., Delcenserie, V., Uhlig, S., & Croubels, S. (2022). Efficacy of fumonisin esterase in piglets as animal model for fumonisin detoxification in humans: Pilot study comparing intraoral to intragastric administration. Toxins, 14(2), 136. https://doi.org/10.3390/toxins14020136
Panisson, J. C., Wellington, M. O., Bosompem, M. A., Nagl, V., Schwartz-Zimmermann, H. E., & Columbus, D. A. (2023). Urinary and serum concentration of deoxynivalenol (DON) and DON metabolites as an indicator of DON contamination in swine diets. Toxins, 15(2), 120. https://doi.org/10.3390/toxins15020120
Sayyari, A., Fæste, C. K., Hansen, U., Uhlig, S., Framstad, T., Schatzmayr, D., & Sivertsen, T. (2018). Effects and biotransformation of the mycotoxin deoxynivalenol in growing pigs fed with naturally contaminated pelleted grains with and without the addition of Coriobacteriaceum DSM 11798. Food Additives & Contaminants: Part A, 35(7), 1394–1409. https://doi.org /10.1080/19440049.2018.1461254
Tassis, P., Raj, J., Floros, D., Mittas, N., Ntarampa, N., Farkas, H., Polizopoulou, Z., & Vasilievic, M. (2024). Efficacy of a multicomponent binding agent against combined exposure to zearalenone and ochratoxin A in weaned pigs. Frontiers in Veterinary Science, 11, 1357723. https://doi.org/10.3389/ fvets.2024.1357723
Tkaczyk, A., & Jedziniak, P. (2021). Mycotoxin biomarkers in pigs—Current state of knowledge and analytics. Toxins, 13(8), 586. https://doi.org/10.3390/toxins13080586
Wang, Z., Lv, Z., Czabany, T., Nagl, V., Krska, R., Wang, X., Han, B., Tao, H., Liu, J., & Wang, J. (2024). Comparison study of two fumonisin-degrading enzymes for detoxification in piglets. Toxins, 16(1), 3. https://doi.org/10.3390/toxins16010003
Wu, J., Wang, H., Liao, J., Ke, L., Lu, D., Deng, B., & Xu, Z. (2024). Mitigation effects of plant carbon black on intestinal morphology, inflammation, antioxidant status, and microbiota in piglets challenged with deoxynivalenol. Frontiers in Immunology, 15, 1454530. https://doi.org/10.3389/fimmu.2024.1454530
Yu, C., Plaizier, P., Gong, J., Yang, C., & Liu, S. (2025). A comprehensive review: Current strategies for detoxification of deoxynivalenol in feedstuffs for pigs. Animals, 15(18), 2739. https:// doi.org/10.3390/ani15182739